

Chapitre VI
Age et croissance
118
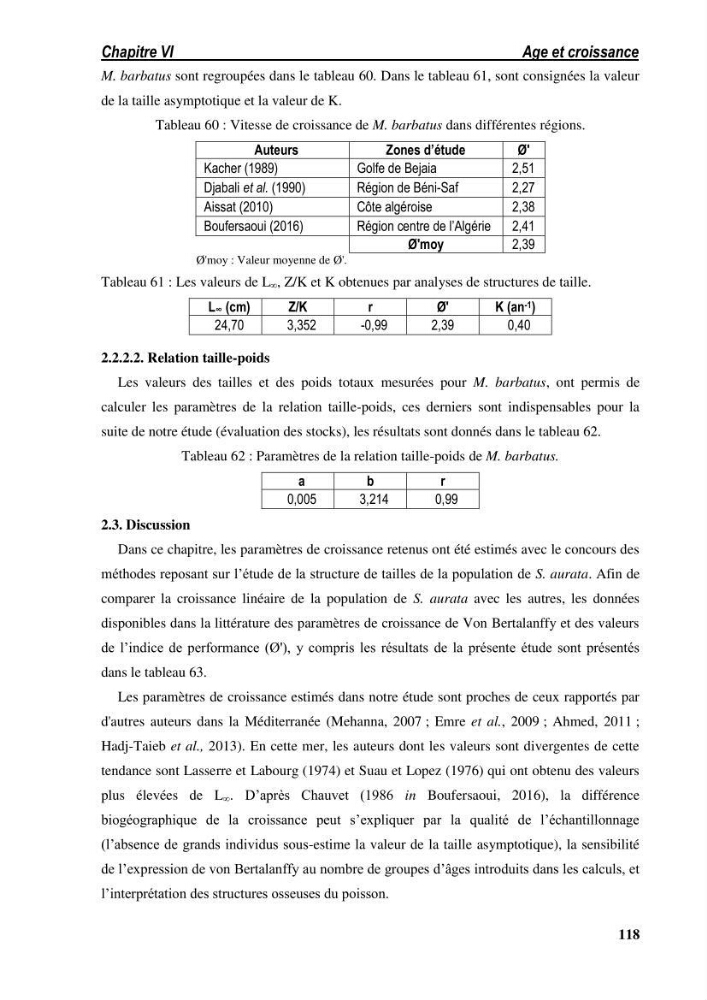
M. barbatus sont regroupées dans le tableau 60. Dans le tableau 61, sont consignées la valeur
de la taille asymptotique et la valeur de K.
Tableau 60 : Vitesse de croissance de M. barbatus dans différentes régions.
Auteurs
Zones d’étude
Ø'
Kacher (1989)
Golfe de Bejaia
2,51
Djabali et al. (1990)
Région de Béni-Saf
2,27
Aissat (2010)
Côte algéroise
2,38
Boufersaoui (2016)
Région centre de l’Algérie 2,41
Ø'moy
2,39
Ø'moy : Valeur moyenne de Ø'.
Tableau 61 : Les valeurs de L ∞ , Z/K et K obtenues par analyses de structures de taille.
L∞ (cm)
Z/K
r
Ø'
K (an -1 )
24,70
3,352
-0,99
2,39
0,40
2.2.2.2. Relation taille-poids
Les valeurs des tailles et des poids totaux mesurées pour M. barbatus, ont permis de
calculer les paramètres de la relation taille-poids, ces derniers sont indispensables pour la
suite de notre étude (évaluation des stocks), les résultats sont donnés dans le tableau 62.
Tableau 62 : Paramètres de la relation taille-poids de M. barbatus.
a
b
r
0,005
3,214
0,99
2.3. Discussion
Dans ce chapitre, les paramètres de croissance retenus ont été estimés avec le concours des
méthodes reposant sur l’étude de la structure de tailles de la population de S. aurata. Afin de
comparer la croissance linéaire de la population de S. aurata avec les autres, les données
disponibles dans la littérature des paramètres de croissance de Von Bertalanffy et des valeurs
de l’indice de performance (Ø'), y compris les résultats de la présente étude sont présentés
dans le tableau 63.
Les paramètres de croissance estimés dans notre étude sont proches de ceux rapportés par
d'autres auteurs dans la Méditerranée (Mehanna, 2007 ; Emre et al., 2009 ; Ahmed, 2011 ;
Hadj-Taieb et al., 2013). En cette mer, les auteurs dont les valeurs sont divergentes de cette
tendance sont Lasserre et Labourg (1974) et Suau et Lopez (1976) qui ont obtenu des valeurs
plus élevées de L ∞ . D’après Chauvet (1986 in Boufersaoui, 2016), la différence
biogéographique de la croissance peut s’expliquer par la qualité de l’échantillonnage
(l’absence de grands individus sous-estime la valeur de la taille asymptotique), la sensibilité
de l’expression de von Bertalanffy au nombre de groupes d’âges introduits dans les calculs, et
l’interprétation des structures osseuses du poisson.