

aux informations obtenues au cours de la campagne
acoustique et de chalutage espagnole qui a été réalisée
sur les côtes algériennes en 2003 et 2004, à bord du
navire océanographique espagnol Vizconde de Eza, et a
permis de déterminer les rendements par traits de chalut
de l’espèce cible, ainsi que sa faune associée au niveau
de la zone d’étude.
L’abondance standardisée (individus/km2) et la biomasse
(kg/km2) de crevettes rouges par sexe, ont été calculées
pour le chalut expérimental. La prédominance des sexes
dans chaque échantillon, le rapport entre ces paramètres
et la profondeur ont été évalués par régression linéaire
(Zar, 1996).
Les assemblages démersaux sur le talus et l’importance
de la crevette rouge dans ces derniers, aussi bien que
sa distribution bathymétrique, ont été obtenues. Une
matrice de données a été réalisée en utilisant l’abondance
standardisée (individuals/km2) de chaque espèce, en
considérant seulement les espèces apparaissant dans plus
de 15% des échantillons. Un pourcentage de similitude a
été calculé au moyen de l’index de Bray-Curtis. L’analyse
de pourcentage de similitude (SIMPER) a été employée
pour estimer la contribution de l’espèce à chaque trait de
chalut. Toutes ces analyses ont été effectuées en utilisant
le logiciel Primer (Clarke et Warwick, 1994).
2. Résultats
2.1. Biologie
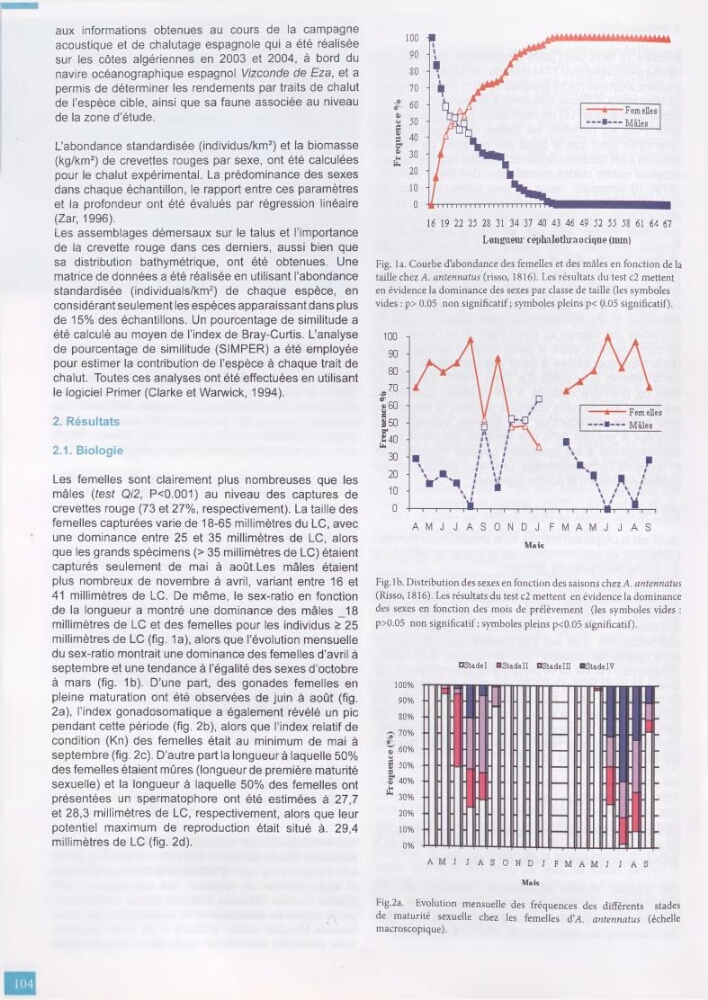
Les femelles sont clairement plus nombreuses que les
mâles (test Qi2, P<0.001) au niveau des captures de
crevettes rouge (73 et 27%, respectivement). La taille des
femelles capturées varie de 18-65 millimètres du LC, avec
une dominance entre 25 et 35 millimètres de LC, alors
que les grands spécimens (> 35 millimètres de LC) étaient
capturés seulement de mai à août.Les mâles étaient
plus nombreux de novembre à avril, variant entre 16 et
41 millimètres de LC. De même, le sex-ratio en fonction
de la longueur a montré une dominance des mâles _18
millimètres de LC et des femelles pour les individus > 25
millimètres de LC (fig. 1a), alors que l’évolution mensuelle
du sex-ratio montrait une dominance des femelles d’avril à
septembre et une tendance à l’égalité des sexes d’octobre
à mars (fig. 1b). D’une part, des gonades femelles en
pleine maturation ont été observées de juin à août (fig.
2a), l’index gonadosomatique a également révélé un pic
pendant cette période (fig. 2b), alors que l’index relatif de
condition (Kn) des femelles était au minimum de mai à
septembre (fig. 2c). D’autre part la longueur à laquelle 50%
des femelles étaient mûres (longueur de première maturité
sexuelle) et la longueur à laquelle 50% des femelles ont
présentées un spermatophore ont été estimées à 27,7
et 28,3 millimètres de LC, respectivement, alors que leur
potentiel maximum de reproduction était situé à. 29,4
millimètres de LC (fig. 2d).
16 19 22 25 28 31 34 37 40 43 46 49 52 55 58 61 64 67
Longueur céphalothraocique (inm)
Fig. la. Courbe d’abondance des femelles et des mâles en fonction de la
taille chez A. antennatus (risso, 1816). Les résultats du test c2 mettent
en évidence la dominance des sexes par classe de taille (les symboles
vides : p> 0.05 non significatif ; symboles pleins p< 0.05 significatif).
Fig.lb. Distribution des sexes en fonction des saisons chez A. antennatus
(Risso, 1816). Les résultats du test c2 mettent en évidence la dominance
des sexes en fonction des mois de prélèvement (les symboles vides :
p>0.05 non significatif ; symboles pleins p<0.05 significatif).
Fig.2a. Evolution mensuelle des fréquences des différents stades
de maturité sexuelle chez les femelles d’A. antennatus (échelle
macroscopique).
104