

Philippe GROS L'espace dans les modèles de dynamique des populations
7
J.C. Allen et al. 17 , qui, d'un point de vue théorique, ont étudié à l'aide de simulations l'effet de perturbations
environnementales sur la survie de sous-populations interconnectées par des flux migratoires, concluent
que la résistance globale de la métapopulation s'accroît quand la dynamique des sous-populations devient
chaotique, et ce d'autant plus que l'hétérogénéité du milieu augmente elle-même.
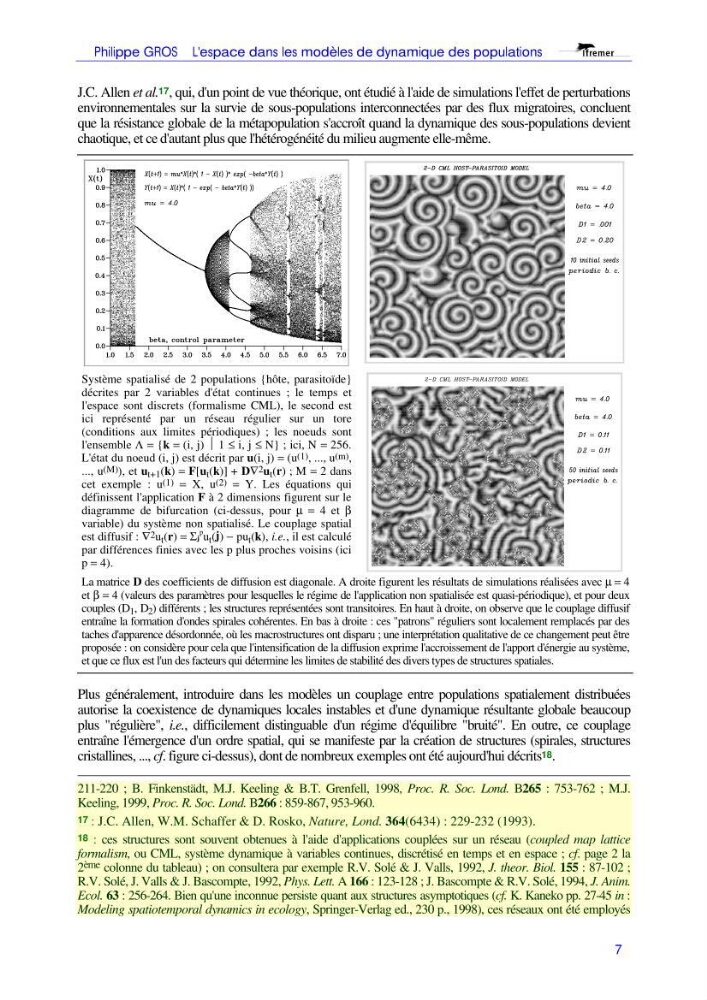
Système spatialisé de 2 populations {hôte, parasitoïde}
décrites par 2 variables d'état continues ; le temps et
l'espace sont discrets (formalisme CML), le second est
ici représenté par un réseau régulier sur un tore
(conditions aux limites périodiques) ; les noeuds sont
l'ensemble Λ = {k = (i, j) 1 ≤ i, j ≤ N} ; ici, N = 256.
L'état du noeud (i, j) est décrit par u(i, j) = (u (1) , ..., u (m) ,
..., u (M) ), et u t+1 (k) = F[u t (k)] + D∇ 2 u t (r) ; M = 2 dans
cet exemple : u (1) = X, u (2) = Y. Les équations qui
définissent l'application F à 2 dimensions figurent sur le
diagramme de bifurcation (ci-dessus, pour µ = 4 et β
variable) du système non spatialisé. Le couplage spatial
est diffusif : ∇ 2 u t (r) = Σj
p u t (j) − pu t (k), i.e., il est calculé
par différences finies avec les p plus proches voisins (ici
p = 4).
La matrice D des coefficients de diffusion est diagonale. A droite figurent les résultats de simulations réalisées avec µ = 4
et β = 4 (valeurs des paramètres pour lesquelles le régime de l'application non spatialisée est quasi-périodique), et pour deux
couples (D 1 , D 2 ) différents ; les structures représentées sont transitoires. En haut à droite, on observe que le couplage diffusif
entraîne la formation d'ondes spirales cohérentes. En bas à droite : ces "patrons" réguliers sont localement remplacés par des
taches d'apparence désordonnée, où les macrostructures ont disparu ; une interprétation qualitative de ce changement peut être
proposée : on considère pour cela que l'intensification de la diffusion exprime l'accroissement de l'apport d'énergie au système,
et que ce flux est l'un des facteurs qui détermine les limites de stabilité des divers types de structures spatiales.
Plus généralement, introduire dans les modèles un couplage entre populations spatialement distribuées
autorise la coexistence de dynamiques locales instables et d'une dynamique résultante globale beaucoup
plus "régulière", i.e., difficilement distinguable d'un régime d'équilibre "bruité". En outre, ce couplage
entraîne l'émergence d'un ordre spatial, qui se manifeste par la création de structures (spirales, structures
cristallines, ..., cf. figure ci-dessus), dont de nombreux exemples ont été aujourd'hui décrits 18 .
211-220 ; B. Finkenstädt, M.J. Keeling & B.T. Grenfell, 1998, Proc. R. Soc. Lond. B265 : 753-762 ; M.J.
Keeling, 1999, Proc. R. Soc. Lond. B266 : 859-867, 953-960.
17 : J.C. Allen, W.M. Schaffer & D. Rosko, Nature, Lond. 364(6434) : 229-232 (1993).
18 : ces structures sont souvent obtenues à l'aide d'applications couplées sur un réseau (coupled map lattice
formalism, ou CML, système dynamique à variables continues, discrétisé en temps et en espace ; cf. page 2 la
2 ème colonne du tableau) ; on consultera par exemple R.V. Solé & J. Valls, 1992, J. theor. Biol. 155 : 87-102 ;
R.V. Solé, J. Valls & J. Bascompte, 1992, Phys. Lett. A 166 : 123-128 ; J. Bascompte & R.V. Solé, 1994, J. Anim.
Ecol. 63 : 256-264. Bien qu'une inconnue persiste quant aux structures asymptotiques (cf. K. Kaneko pp. 27-45 in :
Modeling spatiotemporal dynamics in ecology, Springer-Verlag ed., 230 p., 1998), ces réseaux ont été employés